Specijalist života u mraku
U prijašnjem članku o čovječjoj ribici pisali smo gdje se krije i kako je došlo do današnjeg područja njezine rasprostranjenosti. U ovom članku ćemo se usredotočiti na njezine jedinstvene prilagodbe na ekstremne životne uvjete koje vladaju u podzemlju.
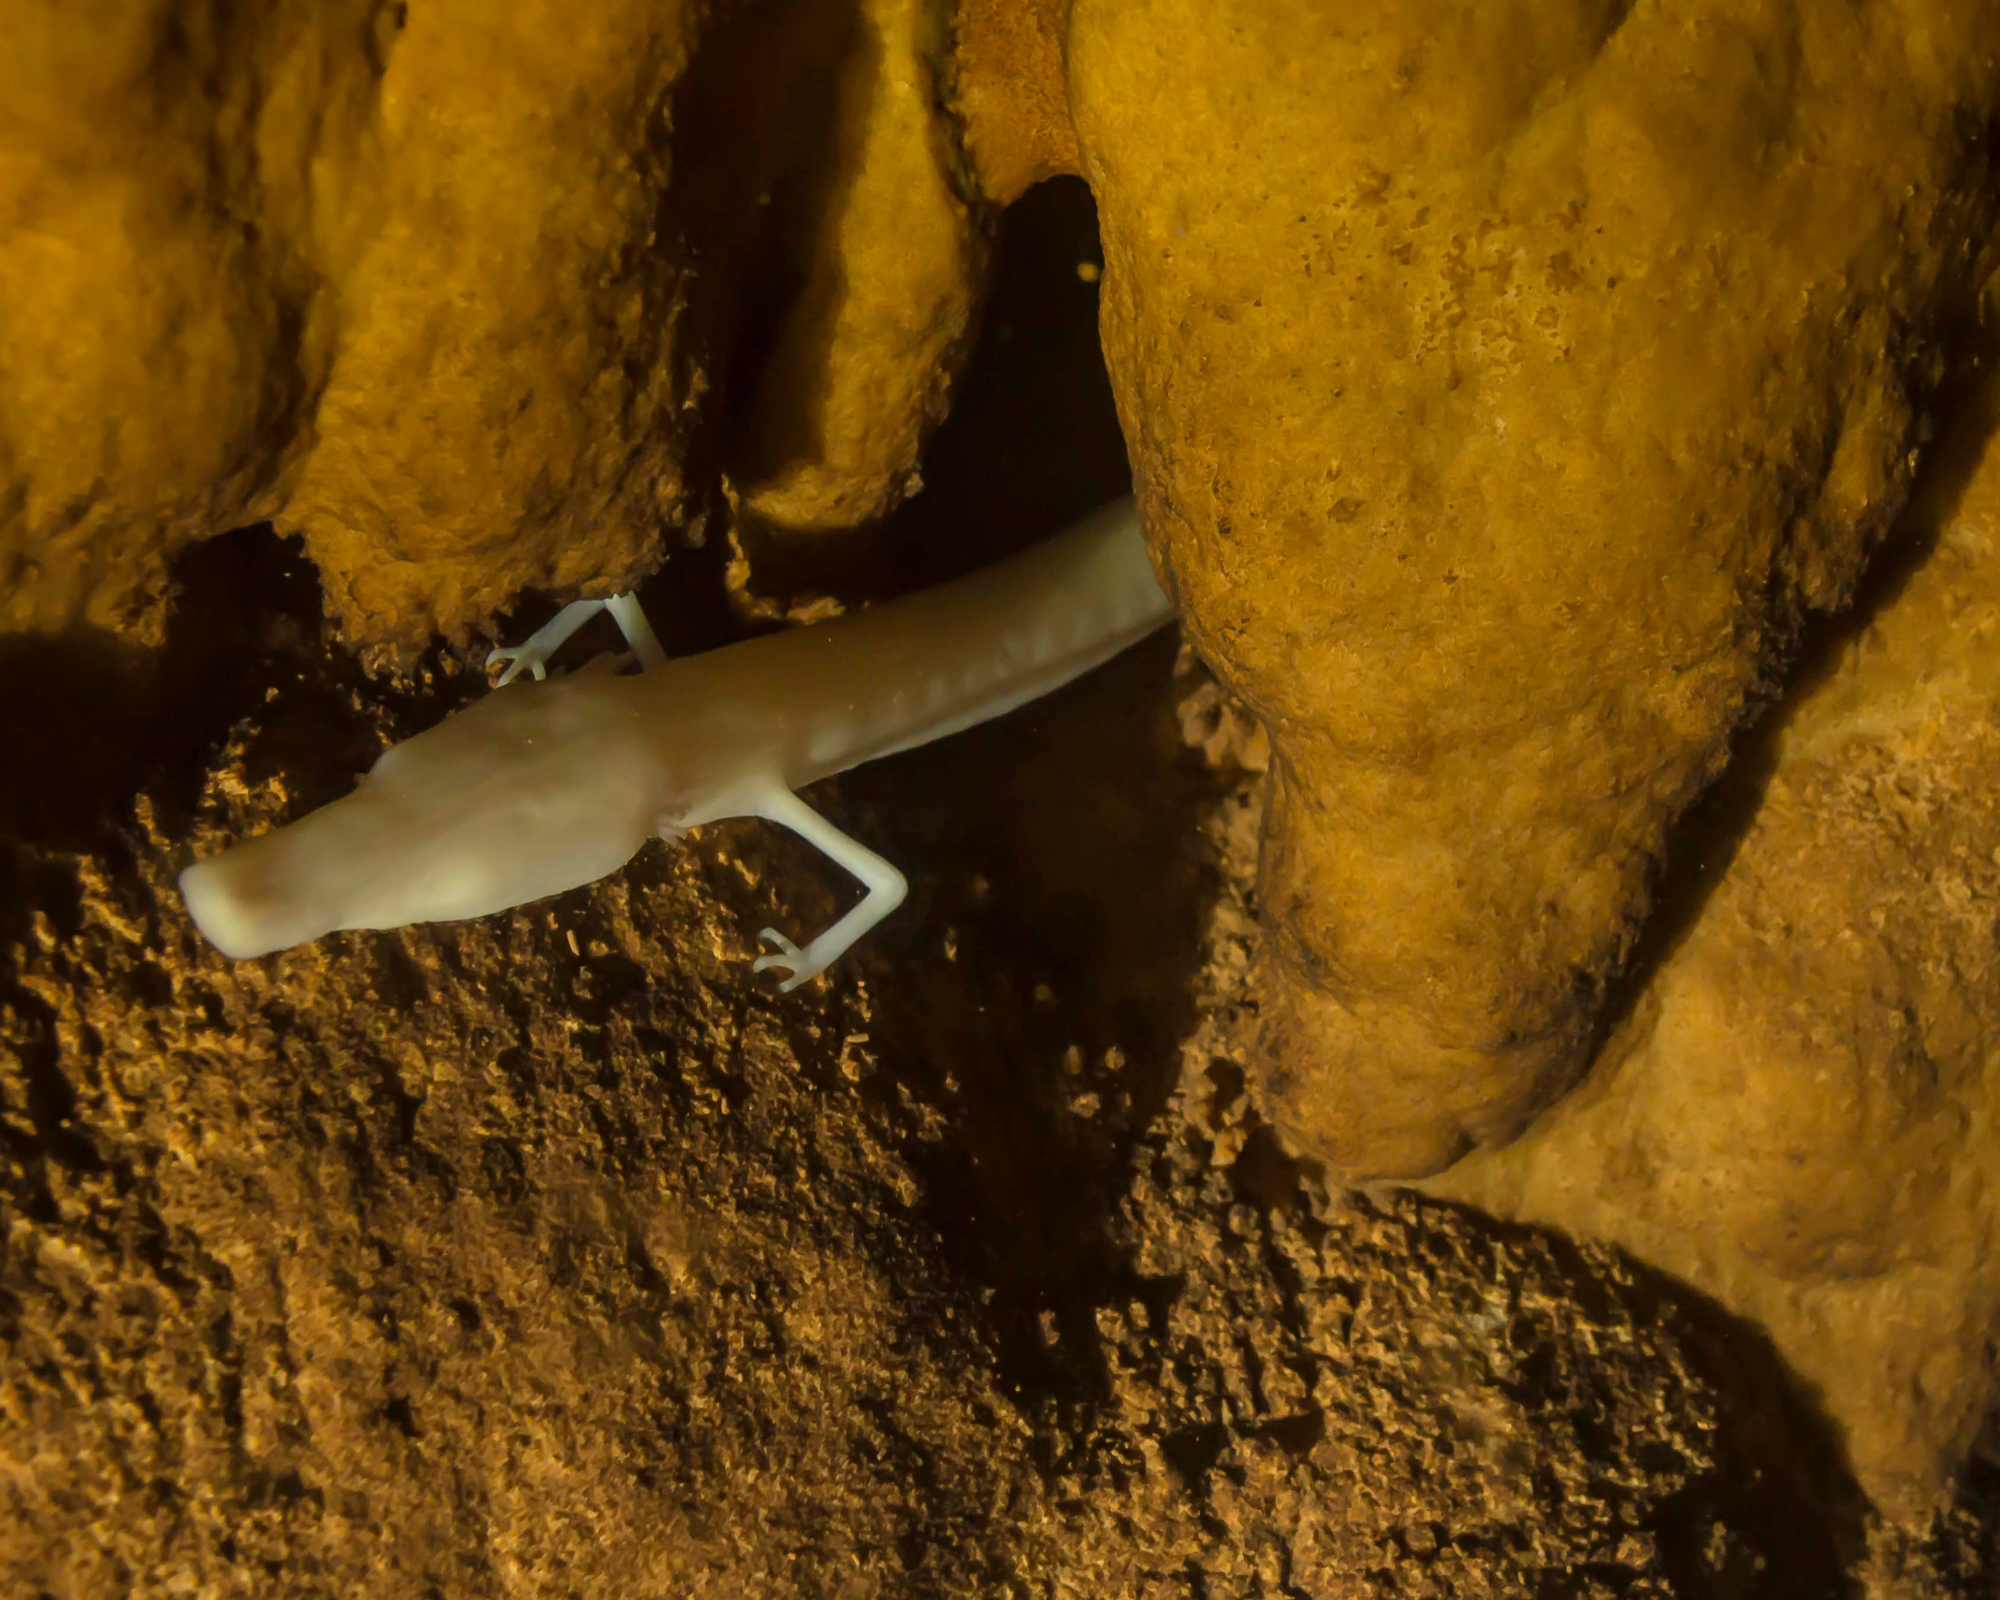
Čovječja ribica nastanjuje mračne dijelove dubokih špilja i podzemnih voda. Ova staništa obilježavaju surovi, ali stabilni uvjeti: temperatura između 5 i 15 °C, stalni mrak i ograničena količina dostupnog plijena. Upravo je kombinacija takvih uvjeta i gotovo potpune izolacije od površinskog svijeta kroz milijune godina oblikovala njezino tijelo i fiziologiju. Ove prilagodbe poznate su pod nazivom troglomorfizmi, a odnose se na sve morfološke i fiziolološke promjene, koje su se razvile kao odgovor na specifične uvjete života u podzemlju. Upravo one čine čovječju ribicu tako uspješnom u ovako zahtjevnom ekosustavu. [1, 12, 14, 17]
izvor: Kovač-Konrad, P. i sur. (2014). Novija speleoronilačka istraživanja jame Klisure. Speleolog, 62(1), 49-52.
Kako je mrak oblikovao izgled čovječje ribice?
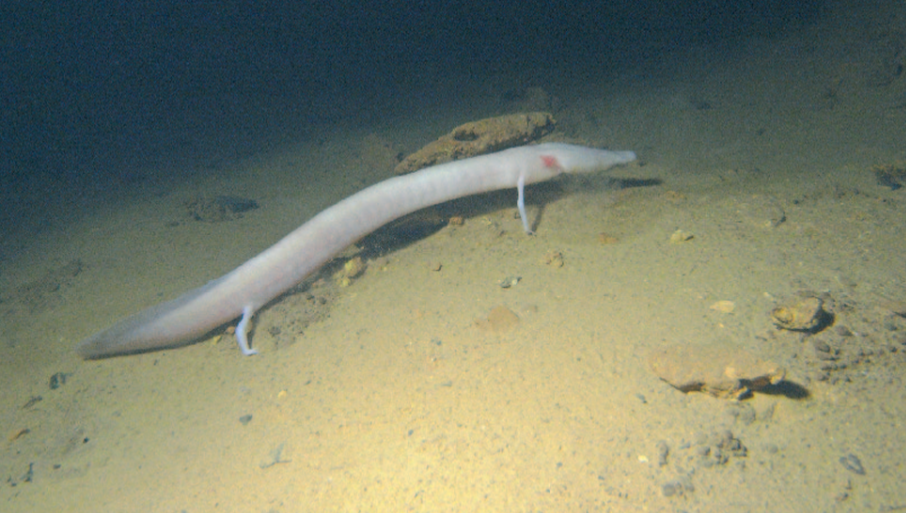
Među najuočljivijim obilježjima troglomorfizma kod čovječje ribice su smanjena razvijenost očiju, gubitak pigmentacije te izduženost pojedinih dijelova tijela. U špiljskim ekosustavima, vid je izgubio svoju ulogu. Zbog stalne tame u podzemlju došlo je do zakržljalosti očiju. Razvoj oka u početku se odvija kao i kod drugih vodozemaca, no nakon nekog vremena razvoj se zaustavlja, a naposljetku dolazi do regresije. Ipak, čovječja ribica nije u potpunosti izgubila sposobnost reagiranja na svjetlost, što je potaknulo na brojna istraživanja. Ako može reagirati na svjetlost, može li izloženost svjetlosti utjecati na razvoj oka? U jednom od provedenih istraživanja, znanstvenici su pokušali odgovoriti na to pitanje. U istraživanju su čovječje ribice bile izložene dugotrajnom svijetlu. Tijekom ličinačkog stadija oči su bile dobro razvijene, ali su kasnije ipak atrofirale. To je dovelo do zaključka da regresija oka nije posljedica samo uvjeta okoliša, već da je genetski uvjetovana. [7, 8, 9, 10, 11, 14, 15]
U špiljskom okolišu funkcije pigmenata, poput zaštite od UV zračenja i kamuflaže postaju nepotrebne. Zbog toga je količina pigmenta kod čovječje ribice izrazito mala, što čini njezino tijelo blijedo. Za obojenost kože odgovorne su kromatofore, specijalizirane stanice koje sadrže i proizvode pigmente, među kojima je i melanin. Ipak, sposobnost stvaranja pigmenta nije u potpunosti izgubljena. Tijekom istog eksperimenta, izloženost stalnom svjetlu potaknulo je stvaranje kožnog pigmenta i dovelo do plavo-crne obojenosti jedinki. [2, 14, 17, 21]
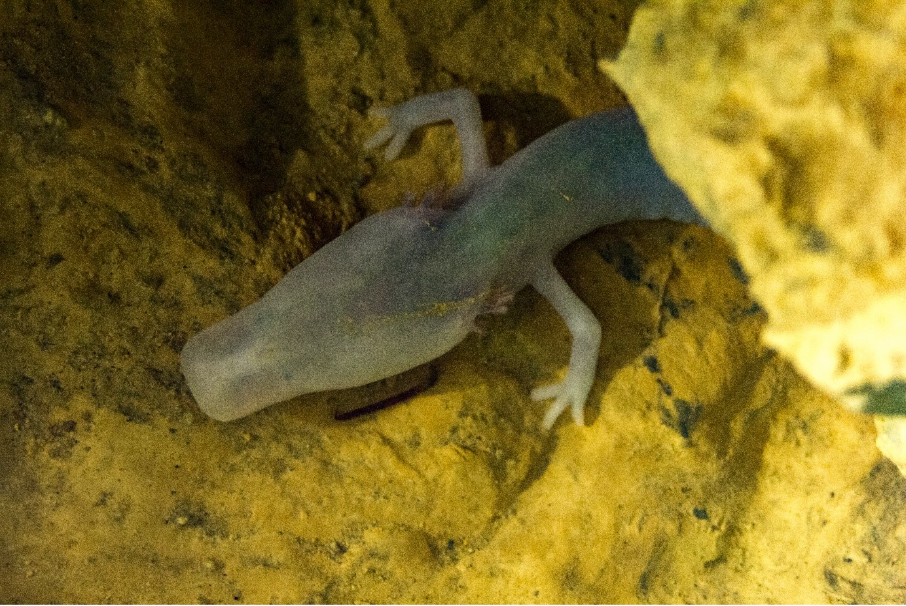
Olm (Proteus anguinus) in Moulis , preuzeta 6.10.2026 s Wikimedia Commons licenca CC BY-SA 2.0
Vrijedi se prisjetiti da koža ima važnu ulogu u životu svih vodozemaca, pa tako i kod čovječje ribice. Ona je dio važnih fizioloških procesa, poput disanja, regulacije tekućine u tijelu i obrane od patogena.
No, to nije njezin jedini način disanja. Čovječja ribica diše i pomoću vanjskih škrga. Iako škrge nisu posljedica prilagodbe na život u mraku, već su povezane s neotenijom koju smo spomenuli u prethodnim člancima Paradoks aksolotla: brojan, a ugrožen i Skroviti stanovnik Dinarskog krša, one su jedne od najprepoznatljivijih obilježja čovječje ribice. Ona može disati i plućima, no njima se uglavnom koristi u određenim nepovoljnim uvjetima. [13, 14, 16]
Prilagodbe na manjak kisika
Iako čovječja ribica može disati i plućima, taj se način disanja smatra neobičnim za nju.
Plućima se uglavnom koristi u uvjetima poput nedostatka kisika ili povišene temperature. Osim što može koristiti pluća kod niskih koncentracija kisika, čovječja ribica može podnijeti i potpuno odsustvo kisika, odnosno anoksiju. U anoksičnim uvjetima nema dovoljno kisika za normalno odvijanje metaboličkih procesa. Većina organizama ne može preživjeti nedostatak kisika jer dovodi do oštećenja stanica, osobito u organima poput mozga i srca. Čovječja ribica takve uvjete može preživjeti zahvaljujući nizu fizioloških i biokemijskih prilagodbi. Jedna od njih povezana je s visokim zalihama glikogena u mišićima, koji fermentira u mliječnu kiselinu koja se dalje koristi u metaboličkim procesima za stvaranje energije. Ipak, ključni mehanizmi koji joj omogućuju otpornost na anoksiju još nisu u potpunosti poznati. [4, 13, 14]
Kako se orijentira u potpunom mraku?
U potpunom mraku, gdje vid gubi svoju ulogu, čovječja ribica razvila je čitav niz iznimnih osjetila koja joj omogućuju snalaženje u prostoru, pronalazak hrane i partnera te prepoznavanje promjena u okolišu. Za orijentaciju koristi mehanoreceptore i elektroreceptore, a može registrirati i promjene u Zemljinu magnetskom polju. Mehanoreceptori i elektroreceptori nalaze se u tri uzdužne pruge duž svake strane tijela. To su osjetne strukture smještene u gornjem sloju kože, koje izgledom podsjećaju na pore, a povezane su sa živčanim sustavom. Njima se podražaji iz okoliša pretvaraju u živčane signale. Mehanoreceptorima može registrirati vrlo slabe promjene u strujanju vode, dok elektroreceptorima osjeća slabe električne impulse povezane s mišićnom aktivnošću drugih životinja. Takvi joj podražaji mogu pomoći u pronalaženju plijena, iako se u većoj mjeri oslanja na kemijske signale. Kemijske podražaje koristi i za pronalazak partnera, prepoznavanje pogodnog staništa te obilježavanje vlastitog teritorija. [3, 5, 13, 14, 18, 19, 20]
Čovječja ribica ima i vrlo dobro razvijen sluh te može registrirati iznimno niske frekvencije zvuka. Tajna njezina iznimnog sluha leži u čvrstom anatomskom spoju između usne šupljine i unutarnjeg uha. Zajedno s plućima, usna šupljina tako sudjeluje u prijenosu i pojačavanju zvučnih valova kroz tijelo. Sluh joj može pomoći pri orijentaciji i kretanju, interakciji s drugim jedinkama i vrstama te pri detektiranju vibracija koje nastaju kretanjem plijena. [6, 8, 14, 19]
U siromašnim podzemnim ekosustavima, sva ova izuzetna osjetila omogućuju čovječjoj ribici da bude uspješna u svojem staništu, da učinkovitije pronalazi plijen i pritom štedi energiju. No, ona ima još nekoliko „asova u rukavu“. U sljedećem članku saznat ćete kako uspijeva preživjeti u ekosustavima s vrlo malo plijena, kako štedi energiju i zašto njezin iznimno dug životni vijek može predstavljati izazov za oporavak populacija.
Do čitanja!
Autor fotografije u zaglavlju: Petra Kovač Konrad

Piše: Melina Tadić
Ciao, ja sam Melina! Trenutno završavam diplomski studij Zaštite prirode na FAMNIT-u, u Kopru. Tijekom studija najviše sam se bavila morem, dok su me volonterske aktivnosti povezale s kopnenim vrstama – pri čemu se razvila moja ljubav prema gmazovima, vodozemcima pa i pticama. Trenutno volontiram u nekoliko udruga, što mi je donijelo neprocjenjiva iskustva i znanja ali i otvorilo vidike.
Literatura:
- Aden, E. (2005). Adaptation to darkness. Encyclopedia of caves.
- Bilandžija, H., Renner, K. J., Ćetković, H. i Jeffery, W. R. (2025). A common mechanism and multiple advantages of pigment loss underlie the convergent evolution of albinism in cave animals. bioRxiv, 2025-07.
- Bouquerel, H. i Valet, J. P. (2003). Is the blind cave salamander Proteus anguinus equiped for magnetic orientation?. In EGS-AGU-EUG Joint Assembly (p. 6833).
- Boutilier, R. G. (2001). Mechanisms of cell survival in hypoxia and hypothermia. Journal of Experimental Biology, 204(18), 3171-3181.
- Bulog, B. (1987) Ultrastructural studies of the inner ear sensory epithelia in the cave salamander Proteus anguinus (Urodela, Amphibia). The Eighth European Anatomical Congress, Antwerp, September 6-12, 1981. Acta Anatomica 130(1): 14.
- Bulog, B. (1989). Differentiation of the inner ear sensory epithelia of Proteus anguinus (Urodela, Amphibia). Journal of morphology, 202(3), 325-338.
- Bulog, B. i Rios, A. (1992). Ultrastructural analysis of the retina of Proteus sp.-Dark pigmented specimens (Urodela, Amphibia). Electron Microsc, 3, 659-660.
- Bulog, B. i Schlegel, P. (2000). Functional morphology of the inner ear and underwater audiograms of Proteus anguinus (Amphibia, Urodela). Pflügers Archiv, 439(Suppl 1), r165-r167.
- Durand, J. P. (1976). Ocular development and involution in the European cave salamander, Proteus anguinus laurenti. The Biological Bulletin, 151(3), 450-466.
- Gogala, M., Michieli, B. i Žener, B. (1965). Electrophysiological investigations of the reduced eye of Proteus anguinus. Act IV Congr Int Speloel Ljubljana, 78-79.
- Hawes, R. (1946) On the eyes and reactions to light of Proteus anguinus. Quarterly Journal of Microscopical Science 85:1-52
- Hervant, F., Mathieu, J. i Durand, J. P. (2000). Metabolism and circadian rhythms of the European blind cave salamander Proteus anguinus and a facultative cave dweller, the Pyrenean newt (Euproctus asper). Canadian Journal of Zoology, 78(8), 1427-1432.0ol.
- Istenič, L. i Bulog, B. (1974). Poraba kisika pri močerilu (Proteus anguinus). Acta carsologica 22: 301-305
- Koller Šarić, K., Jelić, D., Kovač Konrad, P., Jalžić, B., Aljančič, G., Sremac, J., Karaica, B., Bedek, J., Lukić, M., Lukač, M., Lewarne, B., Balázs, G., Holtze, S., Legović, S., Božić, V., Bressi, N., Cizelj, I., Sket, B., Budić, M., Rnjak, G., Herczeg, G., Braude, S., Göritz, F., Hermes, R., Hildebrandt, T. B., Mutschmann, F., Szentiks, C. A., Jalžić, V., Buzjak, N., Basara, D., Cvitanović, H., Ćukušić, I. i Polić, G. (2019): PROTEUS. Udruga HYLA, Zagreb.
- Kos, M. i Bulog, B. (1996). Functional morphology of the pineal organ of Proteus anguinus (Amphibia: Proteidae). Mémoires de biospéologie, 23, 1-4.
- Lindemann, B. i Voute, C. (1976). Structure and function of the epidermis. In Frog Neurobiology: A Handbook (pp. 169-210). Berlin, Heidelberg: Springer Berlin Heidelberg.
- Parzefall, J., Durand, J. P. i Sket, B. (1999). Proteus anguinus Laureti, 1768-Grottenolm. In: Handbuch der Reptilien und Amphibien Europas. 56-76
- Roth, A. i Schlegel, P. (1988). Behavioral evidence and supporting electrophysiological observations for electroreception in the blind cave salamander, Proteus anguinus (Urodela). Brain, behavior and evolution, 32(5), 277-280.
- Schlegel, P., Steinfartz, S. i Bulog, B. (2009). Non-visual sensory physiology and magnetic orientation in the Blind Cave Salamander, Proteus anguinus (and some other cave-dwelling urodele species). Review and new results on light-sensitivity and non-visual orientation in subterranean urodeles (Amphibia). Animal Biology, 59(3), 351-384.
- Vitt, L. J., & Caldwell, J. P. (2013). Herpetology: an introductory biology of amphibians and reptiles. Academic press.
- Yasutomi, M. i Yamada, S. (1998). Formation of the dermal chromatophore unit (DCU) in the tree frog Hyla arborea. Pigment cell research, 11(4), 198-205.