Kako sačuvati energiju u siromašnom staništu?
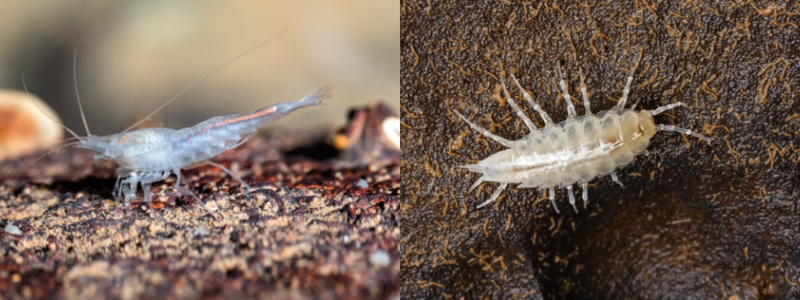
Čovječja ribica hrani se različitim podzemnim beskralježnjacima, poput rakušaca, mekušaca, ličinki špiljskih kukaca, špiljskom kozicom (Troglocaris anophthalmus), punoglavcima livadne smeđe žabe (Rana temporaria), običnom gujavicom (Lumbricus terrestris) i ribom pijorom (Phoxinus phoxinus). U njezinim jedinstvenim staništima, o kojima smo detaljnije pisali u Skroviti stanovnik Dinarskog krša 2. dio, plijen je izrazito malobrojan. Zbog toga, nije dovoljno samo učinkovito pronaći i uloviti plijen, već je važno preživjeti duga razdoblja bez njega.
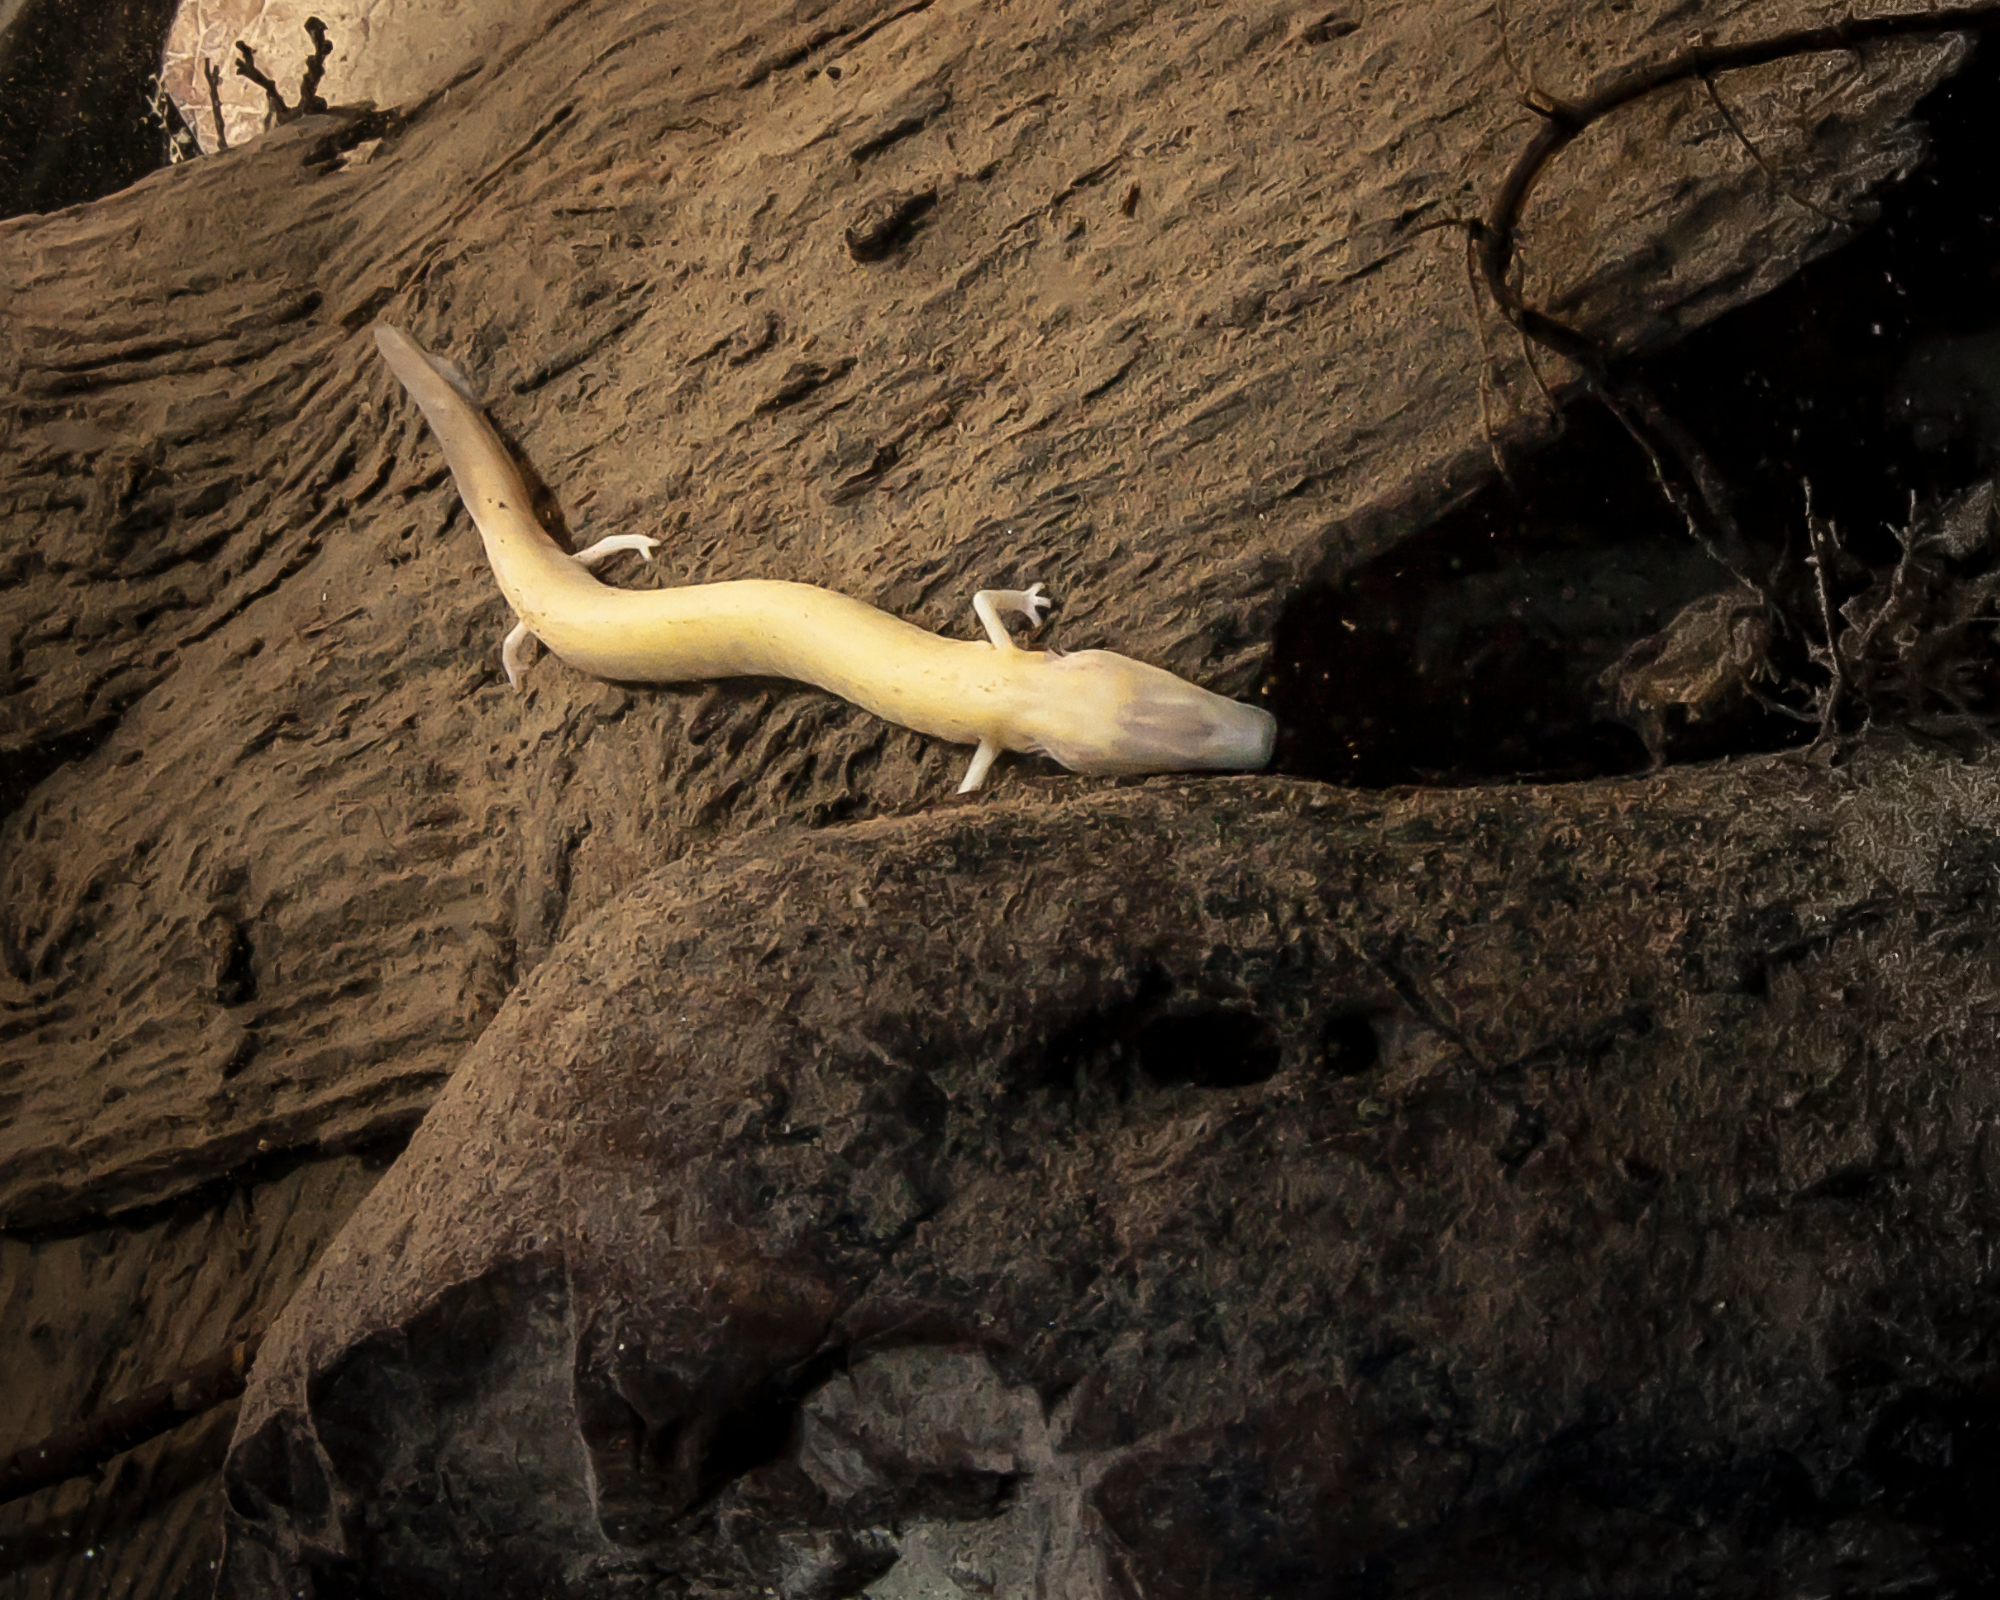
Čovječja ribica razvila je iznimnu otpornost na gladovanje i bez hrane može preživjeti između 18 i 96 mjeseci.
Znanstvenici su u eksperimentima uspoređivali njenu otpornost na gladovanje s otpornišću daždevnjaka Euproctus asper. Nakon 240 dana bez hrane čovječja ribica nije pokazivala znakove izgladnjelosti, dok E.asper nije preživio više od 90 dana. Ova iznimna sposobnost djelomično se može objasniti njezinim vrlo sporim metabolizmom i smanjenom razinom aktivnosti. U usporedbi s većinom površinskih vodozemaca, čovječja ribica troši znatno manje energije, a njezina minimalna potrošnja kisika u mirovanju može biti i do osam puta niža. Tijekom dugotrajnog nedostatka hrane može smanjiti potrošnju energije i štedjeti vlastite bjelančevine, uz dodatno smanjenje aktivnosti. Kada hrana ponovno postane dostupna, ima sposobnost brzo se oporaviti od gladovanja. [7, 10, 12]
Kod čovječje ribice svaki je pokret promišljen kako bi sačuvala dragocjenu energiju. Zato teritorij ima važnu ulogu u njezinom životu.
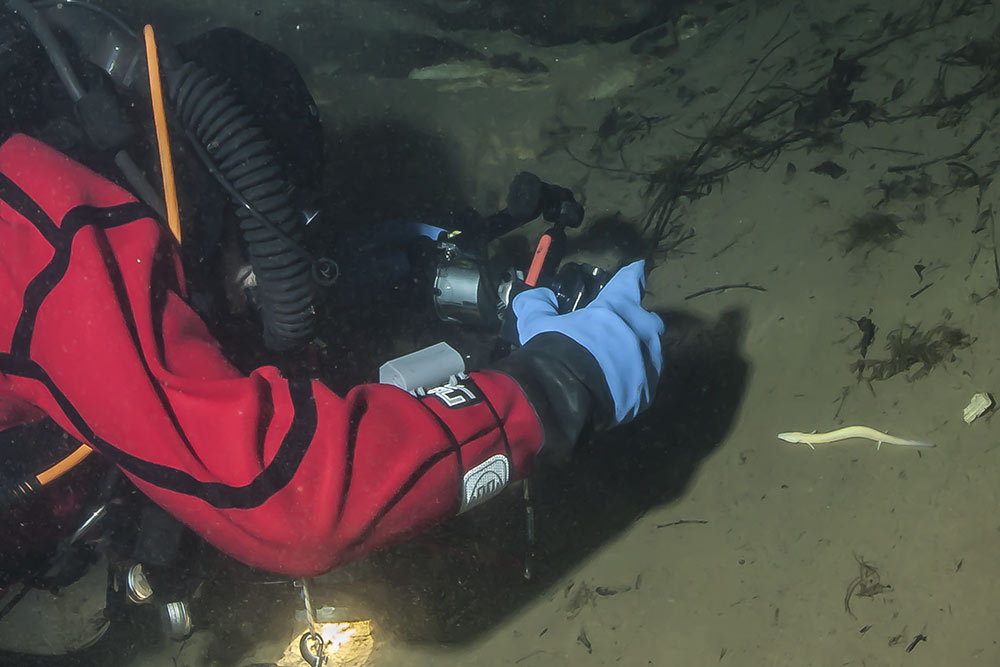
Poznavanje vlastitog teritorija i kvalitete staništa smanjuje potrebu za kretanjem i traženjem novih izvora hrane, čime uvelike štedi svoju energiju. Čovječja ribica izuzetno je teritorijalna, a istraživanja su pokazala da pojedine jedinke mogu godinama ostati gotovo na istom mjestu. U jednom takvom istraživanju provedenom u Bosni i Hercegovini, znanstvenici su pomoću CMR metode (capture–mark–recapture, hrv. ulov–markiranje–ponovni ulov) pratili kretanje jedinki u špilji Vruljak. Ovom metodom jedinke se uhvate i označe te se prilikom sljedećeg istraživanja bilježe ponovni ulovi. 19 odraslih čovječjih ribica označeno je na transektu dugom 270 m koji se onda obilazio više godina. Većina jedinki u razdoblju istraživanja nije se pomaknula više od 10 m, dok je “najpustolovnija” tijekom 230 dana prešla svega 38 metara. Za razliku od odraslih jedinki, smatra se da se mlađe ipak više kreću zbog potrage za svojim idealnim teritorijem, s kojeg se onda kao odrasle ne udaljavaju previše. [2, 3, 4, 6, 10, 11, 14 ]
Spori životni ciklus i zašto može biti problem?
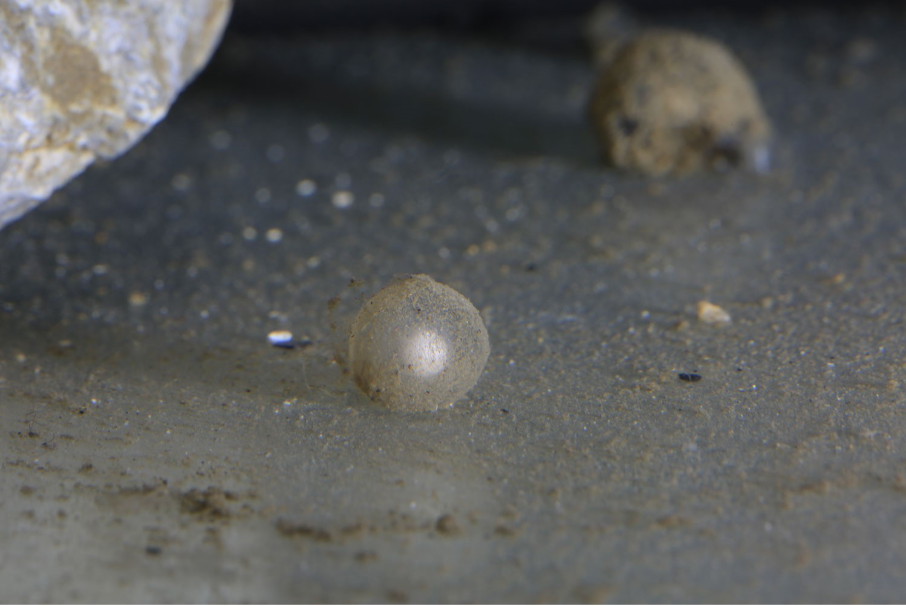
Čovječja ribica može živjeti i do 100 godina. Za tako dug život važni su određeni uvjeti, poput staništa bez predatora, povoljnih koncentracija kisika i sporog metabolizma. No, dug životni vijek prati i spori razvoj, kasno dostizanje spolne zrelosti i vrlo spor reproduktivni ciklus. Spolnu zrelost čovječja ribica doseže tek između 14. i 18. godine života, a za razmnožavanje može biti sposobna i nakon 80. godine života. U prosjeku se razmnožava jednom svakih 12 godina, a tijekom tog razdoblja preferira hladnije temperature, između 11 i 12 °C. Na samim počecima istraživanja njezina životnog ciklusa vodile su se rasprave rađa li čovječja ribica žive mlade (viviparija) ili pak polaže jajašca (oviparija). Jedan od nekoliko događaja koji je potaknuo na ovu raspravu bio je pronalazak spermatofora1, koji upućuju na unutarnju oplodnju. Izlijeganje živih mladih opisao je i poljski zoolog, a postoje i druga svjedočenja o izlijeganju živih mladih u Sloveniji. No, nakon mnogih pokušaja uzgoja i opažanja polaganja jajašaca u zatočeništvu, znanstvenici su potvrdili da je oviparnost njezin jedini način razmnožavanja. [1, 9, 13, 10, 15]
- Mnogi vodenjaci i daždevnjaci razmnožavaju se tako da mužjak odloži spermatofor, paketić spermija obavijen zaštitnom ovojnicom, na podlogu, a ženka ga preuzme kloakom. ↩︎
Vrsti kojoj su potrebne godine da dosegne spolnu zrelost i koja se razmnožava u tako dugim vremenskim razmacima potrebni su stabilni uvjeti staništa. Koliko okolišni uvjeti mogu utjecati na njezino razmnožavanje pokazuje i primjer s lokaliteta Hermannshöhle u Njemačkoj, gdje je 1931. godine osnovan biospeleološki laboratorij. U jamsko jezero tijekom 25 godina naseljeno je 20 čovječjih ribica podrijetlom iz Postojnske jame. Do 2015. godine preživjelo je devet jedinki, četiri mužjaka i pet ženki. Ipak, tijekom više od 80 godina nije zabilježeno njihovo razmnožavanje. Tek nakon poboljšanja uvjeta u jezeru i izgradnje mjesta za zaklon razmnožavanje je započelo, a početkom 2016. godine uočeno je i prvo jaje. [5, 8, 10]
Ovaj primjer dobro pokazuje koliko promjene uvjeta u staništu mogu utjecati na ponašanje čovječje ribice.
Iako je čovječja ribica iznimno dobro prilagođena životu u podzemlju, njezin specifičan životni ciklus čini je posebno osjetljivom na promjene u staništu.
Kada vrsti trebaju godine za odrastanje, specifični i stabilni uvjeti za život i razmnožavanje, populacija se ne može brzo oporaviti nakon pada brojnosti. Populacije su posebno ugrožene nakon gubitka većeg broja jedinki. To se primjerice može dogoditi kada ih prodor velikih količina vode u podzemlje izbaci na površinu. Tako “izgubljene” jedinke nije moguće vratiti u njihova podzemna staništa, a jedan od razloga je taj što mogu prenijeti površinske patogene na druge jedinke u populaciji, pa ih je, ako se uspiju na vrijeme spasiti, potrebno zbrinuti u oporavilišta. No, što se sve događa s čovječjim ribicama koje budu izbačene na površinu? Koji su još razlozi zašto se ne mogu vratiti u staništa? O tome, kao i o tome na koje sve načine takve jedinke mogu pridonijeti znanosti i boljoj zaštiti vrste, bit će riječi u sljedećem članku.
Do čitanja!
Autor fotografije u zaglavlju: Petra Kovač Konrad, arhiv Udruge Hyla
Piše: Melina Tadić
Ciao, ja sam Melina! Trenutno završavam diplomski studij Zaštite prirode na FAMNIT-u, u Kopru. Tijekom studija najviše sam se bavila morem, dok su me volonterske aktivnosti povezale s kopnenim vrstama – pri čemu se razvila moja ljubav prema gmazovima, vodozemcima pa i pticama. Trenutno volontiram u nekoliko udruga, što mi je donijelo neprocjenjiva iskustva i znanja ali i otvorilo vidike.
Literatura
- Aljančič, G. i Aljančič, M. (1998) Človeška ribica (Proteus anguinus). Proteus 60 (2): 83-87.
- Balázs, G., Lewarne, B. i Herczeg, G. (2020). Extreme site fidelity of the olm (Proteus anguinus) revealed by a long‐term capture–mark–recapture study. Journal of Zoology, 311(2), 99-105.
- Delić, T., Zakšek, V., Trontelj, P. i Recknagel, H. (2023). Koliko zapravo poznajemo čovječju ribicu, simbol Dinarskog krša? Novosti u poznavanju taksonomije, biologije, biogeografije i ponašanja naše najpoznatije podzemne životinje. Subterranea Croatica, 21(2), 2-11.
- Durand, J. P. i Parzefall, J. (1987). Is the Development of the Rheotaxis in the Blind Cave Proteus? Traite de Zoologie 14(2): 515-524.
- Grosse, W.R, Ipsen, A., Guillaume, O. i Aljančić, G. (2018). Proteus anguinus Laurenti, 1768 – Cave salamander. In Threatened newts and salamanders – captive care management , Vol 2 (W.R.Grosse i sur., ur.) Deutsche Gesellschaft fur Herpetologie und Terrarienkunde, Mannhaim, Germany. Mertensiella 28: 148-199.
- Guillaume, O. (2000). Role of chemical communication and behavioural interactions among conspecifics in the choice of shelters by the cave-dwelling salamander Proteus anguinus (Caudata, Proteidae). Canadian Journal of Zoology, 78(2), 167-173.
- Hervant, F., Mathieu, J. i Durand, J. (2001). Behavioural, physiological and metabolic responses to long-term starvation and refeeding in a blind cave-dwelling (Proteus anguinus) and a surface-dwelling (Euproctus asper) salamander. Journal of Experimental Biology, 204(2), 269-281.
- Ipsen, A. i Knolle, F. (2017). The olm of Hermann’s Cave, Harz Mountains, Germany–eggs laid after more than 80 years. Natura Sloveniae, 19(1), 51-52.
- Juberthie, C., Durand, J., i Dupuy, M. (1996). La reproduction des Protées (Proteus anguinus): bilan de 35 ans d’élevage dans les grottes-laboratoires de Moulis et d’Aulignac. Mémoires de biospéologie, 23, 53-56.
- Koller Šarić, K., Jelić, D., Kovač Konrad, P., Jalžić, B., Aljančič, G., Sremac, J., Karaica, B., Bedek, J., Lukić, M., Lukač, M., Lewarne, B., Balázs, G., Holtze, S., Legović, S., Božić, V., Bressi, N., Cizelj, I., Sket, B., Budić, M., Rnjak, G., Herczeg, G., Braude, S., Göritz, F., Hermes, R., Hildebrandt, T. B., Mutschmann, F., Szentiks, C. A., Jalžić, V., Buzjak, N., Basara, D., Cvitanović, H., Ćukušić, I. i Polić, G. (2019): PROTEUS. Udruga HYLA, Zagreb.
- Roth, A. i Schlegel, P. (1988). Behavioral evidence and supporting electrophysiological observations for electroreception in the blind cave salamander, Proteus anguinus (Urodela). Brain, behavior and evolution, 32(5), 277-280.
- Schreiber, E. (1912). Herpetologia Europaea: eine systematische Bearbeitung der Amphibien und Reptilien welche bisher in Europa aufgefunden sind. G. Fischer.
- Sket, B. (2007). Kaj vemo in kaj si mislimo o človeški ribici: utrinki iz zgodovine in nekaj novosti.[What do we know and what do we think about proteus]. Proteus (Ljubljana), 70(1), 14-27.
- Uiblein, F. i Parzefall, J. (1993). Does the cave salamander Proteus anguinus detect mobile prey by mechanical cues. Mém. Biospéol, 20, 261-264.
- Voituron, Y., De Fraipont, M., Issartel, J., Guillaume, O. i Clobert, J. (2010). Extreme lifespan of the human fish (Proteus anguinus): a challenge for ageing mechanisms. Biology letters, 7(1), 105.